В физиологических условиях Em представляет собой непрерывную функцию времени. В каждый момент времени через множество ионных каналов и транспортеров осуществляется трансмембранный ионный ток, переносящий заряды в противоположных направлениях в соответствии с их ионной селективностью. Алгебраическая сумма этих токов составляет общий трансмембранный ток.
Потенциал действия кардиомиоцита отражает соотношение входящих и выходящих токов. Деполяризующий стимул (обычно приходящий от соседней возбужденной клетки) способен резко изменять Em кардиомиоцита, находящегося в состоянии покоя, до критического значения (порогового уровня).
При этом резко изменяются свойства клеточной мембраны и ее проницаемость для ионов, что приводит к последовательным событиям, в которые вовлекаются различные входящие и выходящие ионные токи, которые вместе составляют потенциал действия кардиомиоцита. Подобным образом электрический стимул передается от одного кардиомиоцита к другому.
Сократительные кардиомиоциты, в отличие от волокон скелетных мышц, электрически сопряжены друг с другом, поэтому волна деполяризации передается от клетки к клетке и это не зависит от эфферентного нервного импульса. Миокард активируется емкостными токами. Они генерируются во время волны деполяризации, которая подходит к участку миокарда, находящемуся в состоянии покоя.
Емкостные токи, в отличие от ионных токов, генерируемых перемещением ионов через мембрану, образуются в результате движения электронов в направлении к или от поверхностей мембраны. Эти изменения, связанные с электротоническими потенциалами, осуществляются пассивно и не зависят от проводимости самой мембраны. В итоге уменьшение положительного заряда на наружной поверхности мембраны приводит к снижению отрицательного заряда на внутриклеточной поверхности мембраны. Подобные перемещения переносимого электронами заряда генерируют емкостный ток.
Когда в результате возбуждающего стимула снижается отрицательный потенциал Em и его значение выходит за пределы порогового уровня (для сократительного кардиомиоцита предсердий или желудочков он равен -65 мВ) открываются Na+-каналы и ток Na+ (INa) устремляется в клетку, что приводит к резкому изменению Еm, и его значение становится положительным. Далее запускаются последовательные события, связанные с открытием и закрытием ион-селективных каналов.
Направление и величина пассивного перемещения (и результирующего тока) ионов при определенном трансмембранном потенциале определяются отношением их внутри и внеклеточной концентраций и потенциалом реверсии этих ионов, и этот ток более выражен, когда ионы перемещаются из области с наибольшей концентрацией этих ионов.
Пороговый потенциал представляет собой потенциал с наименьшим значением Еm, при котором открытие достаточного количества Na+-каналов (или Са2+-каналов в кардиомиоцитах проводящей системы) способно вызвать последовательные события, связанные с открытием каналов, что будет генерировать распространение возбуждения.
Незначительный (подпороговый) стимул деполяризует мембрану пропорционально силе стимула, при этом возникает локальный ответ вследствие активации небольшого количества Na+-ка налов. Такой стимул не может инициировать деполяризующие токи, необходимые для активации соседних клеток (т.е. его недостаточно для активации регенеративного потенциала действия).
В противоположность этому, если стимул достаточен для снижения Еm до порогового значения, возникает регенеративный потенциал действия, причем входящий ток Na+ еще больше деполяризует мембрану, увеличивается проницаемость для Na+, что позволяет еще большему количеству Na+ попасть в клетку.
Дальнейшее развитие последовательного процесса деполяризации не зависит от начального деполяризующего стимула, и амплитуда потенциала действия не станет большей, даже если увеличится сила стимула, что подчиняется закону «все или ничего».
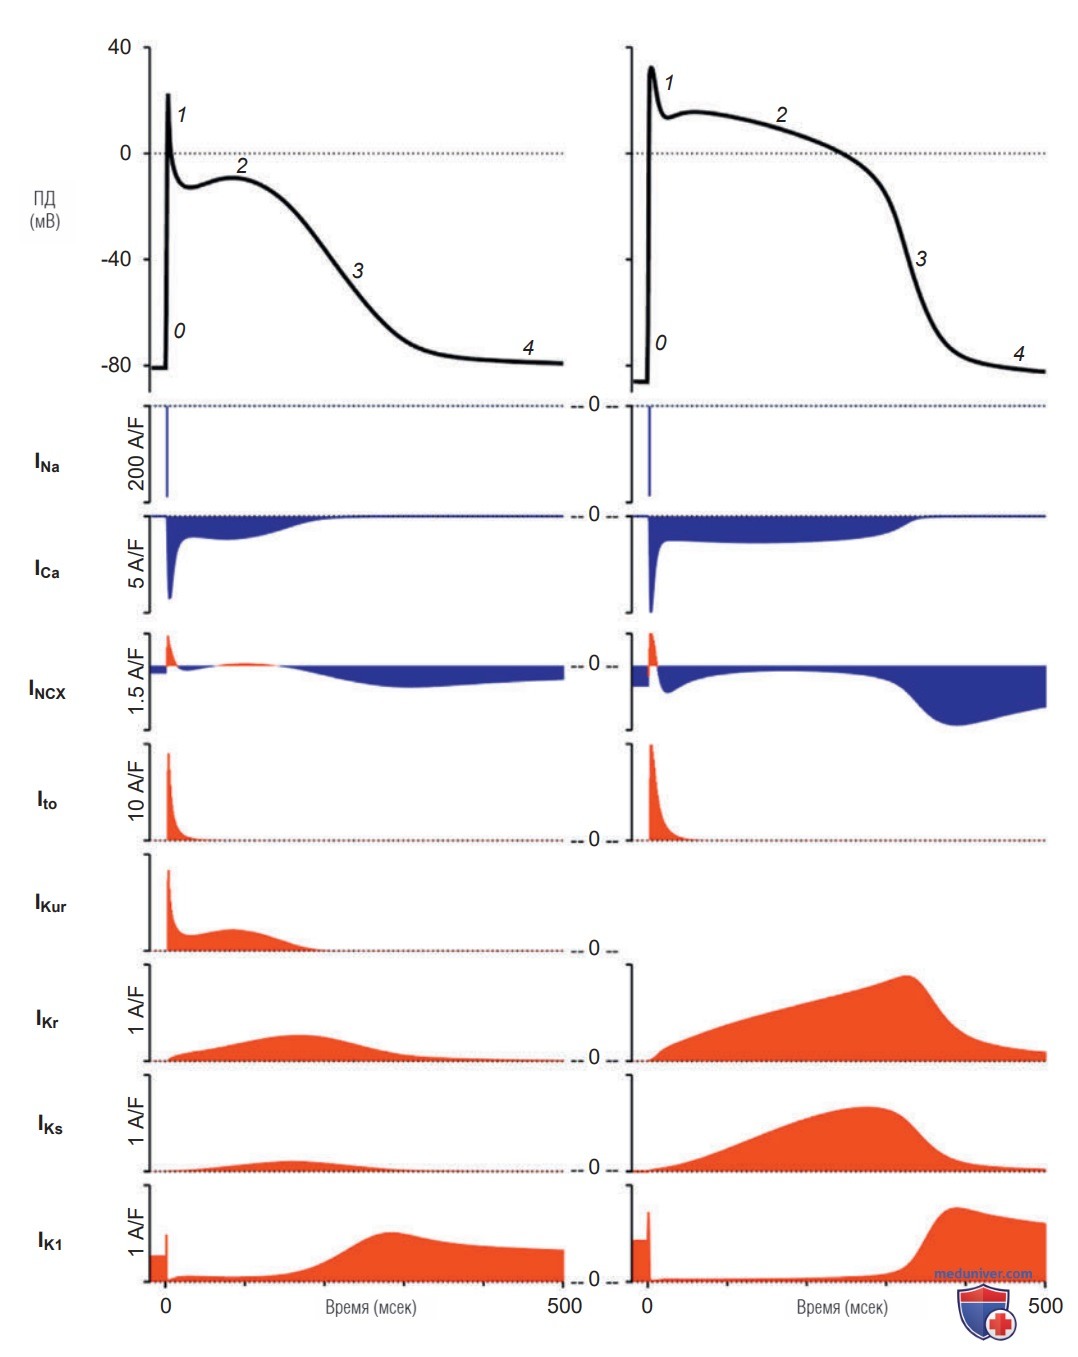
Изменения электрических токов во время потенциала действия происходят в относительно определенные промежутки времени, и разница потенциалов меняется в зависимости от вида клеток. Продолжительность потенциала действия в нейронах занимает несколько миллисекунд, тогда как в кардиомиоцитах она составляет несколько сотен миллисекунд. В потенциале действия можно выделить 5 фаз (нумеруемых от 0 до 4). Фаза 4 представляет собой Еm покоя и описывает состояние мембранного потенциала клетки в отсутствие стимуляции.
На протяжении потенциала действия разность потенциалов с наружной и внутренней сторон мембраны кардиомиоцита варьирует от -94 до +30 мВ (рис. 1). К+ пассивно выходит из клетки и его потенциал реверсии (Еm) составляет приблизительно -94 мВ, если его концентрация находится в физиологических пределах. Ток Са2+ направлен внутрь клетки, это обусловлено величиной его потенциала реверсии (ЕCa), равной +64 мВ.
Рисунок 1. Вклад деполяризующих входящих и реполяризующих выходящих токов в потенциал действия (ПД) предсердий и желудочков. Сверху показаны кардиомиоциты предсердий (слева) и желудочков (справа). Обозначены пять фаз ПД: 0 — подъем ПД вверх представляет собой деполяризацию мембраны; 1 — начальная реполяризация; 2 — фаза плато; 3 — поздняя реполяризация; 4 — фаза покоя (диастолическая). Скорость изменения ПД прямо пропорциональна сумме основных трансмембранных ионных токов (снизу). Входящие токи (синий цвет) вызывают деполяризацию мембраны, в то время как выходящие токи (красный цвет) способствуют реполяризации. ПД кардиомиоцитов желудочков обычно имеет более длительную продолжительность, более высокий уровень потенциала плато (фаза 2) и более отрицательный мембранный потенциал покоя (фаза 4) по сравнению с ПД кардиомиоцитов предсердий. ICa — ток Ca2+ через каналы L-типа; IK1 — ток К+ внутреннего выпрямления; IKr — быстро активируемый ток К+ задержанного выпрямления; IKs — медленно активируемый ток К+ задержанного выпрямления; IKur — сверхбыстро активируемый К+ ток задержанного выпрямления; INa — ток Na+; INCX — Na+/Ca2+-обменник; Ito — выходящий ток К+. ПД — потенциал действия
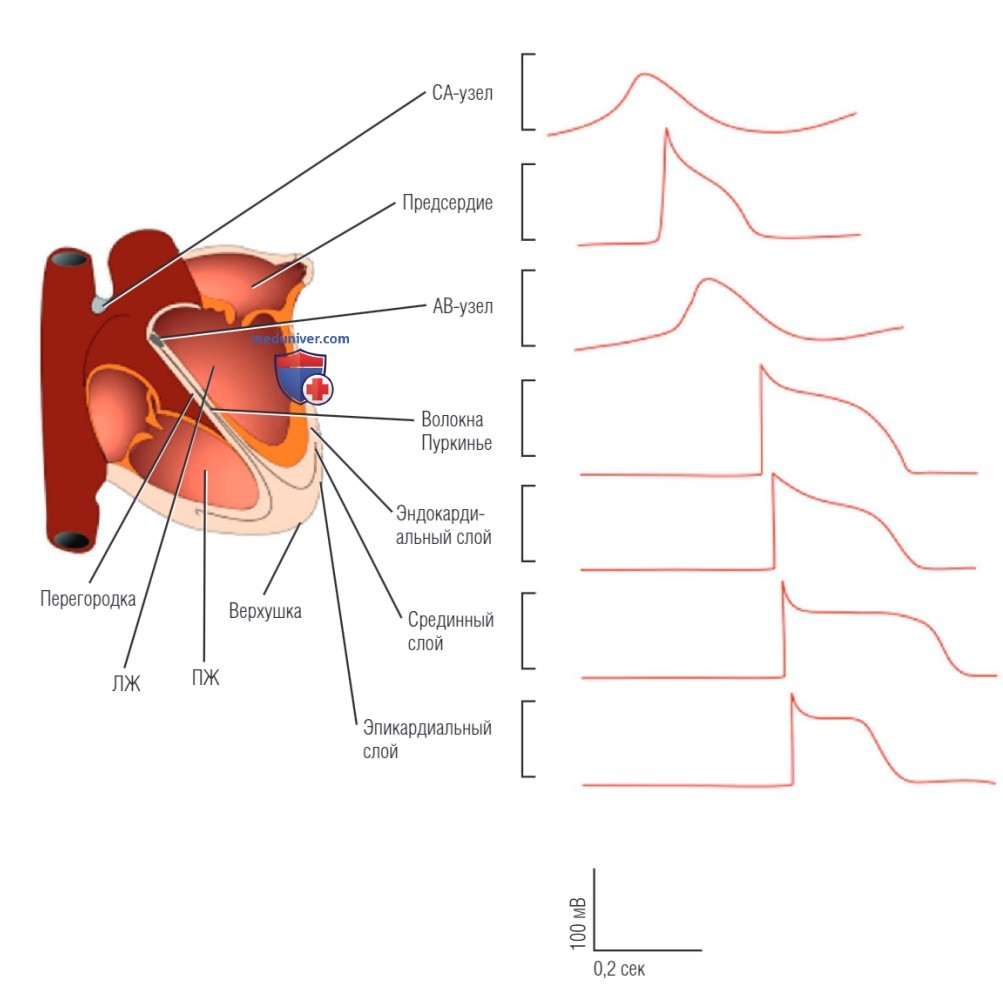
Потенциалы действия в нормальных кардиомиоцитах предсердий и желудочков, а также кардиомиоцитах пучка Гиса и волокон Пуркинье (кардиомиоциты с быстрым ответом) имеют очень резкий подъем, обусловленный быстрым входом натрия INa.
В противоположность этому потенциалы действия в нормальных кардиомиоцитах синоатриального узла (СА-узла) и атриовентрикулярного узла (АВ-узла), а также в различных пораженных кардиомиоцитах (кардиомиоциты с медленным ответом) имеют очень медленное увеличение потенциала, обусловленное медленным входом главным образом Са2+ через потенциал-зависимые Са2+-каналы L-типа (ICaL), а не быстрым входом натрия INa (рис. 2).
Рисунок 2. Формы волн потенциалов действия, смещенные во времени для отражения временной последовательности распространения возбуждения, различаются в разных областях сердца. АВ-узел — атриовентрикулярный узел; ЛЖ — левый желудочек; ПЖ — правый желудочек; СА-узел — синоатриальный узел