а) Фаза 4: мембранный потенциал покоя. Em кардиомиоцитов предсердий и желудочков в покое остается постоянным на протяжении всей диастолы. Еm покоя формируется за счет разности концентраций ионов с наружной и внутренней поверхностей мембраны, избирательной проницаемости мембраны (проводимости) в отношении различных ионов.
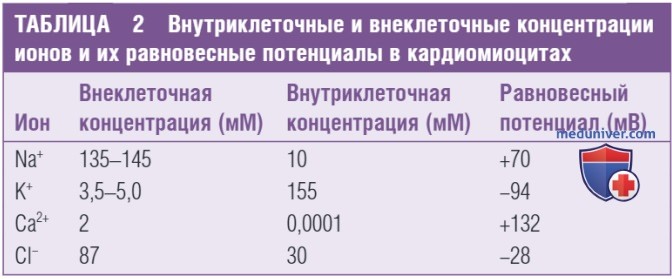
Значительные трансмембранные градиенты концентрации Na+, К+, Са2+, и Cl- поддерживаются благодаря работе ионных насосов и ионных обменников (табл. 2).
В физиологических условиях и в состоянии покоя мембрана наиболее проницаема для К+ и относительно непроницаема для других ионов. Когда клетка находится в состоянии покоя, наибольшей мембранной проводимостью обладают К+ (gK в 100 раз выше, чем gNa), потому что в покое значительное количество К+-каналов открыто, тогда как Na+-каналы и Са2+-каналы в основном закрыты.
Таким образом, наибольший вклад в Еm покоя вносят К+. Поэтому результирующий Еm почти всегда равен потенциалу реверсии К+ (Еm приравнивается к ЕK). Еm покоя немного менее отрицательный, чем ЕK, потому что клеточная мембрана незначительно проницаема для других ионов.
В физиологических условиях в кардиомиоцитах предсердий, пучка Гиса, волокон Пуркинье и желудочков за поддержание потенциала покоя на уровне ЕK ответственны К+-каналы внутреннего выпрямления (Kir), пропускающие выходящий ток К+ внутреннего выпрямления (IK1).
Каналы Kir обеспечивают избирательное перемещение К+ в клетку наряду с выраженным потенциал-зависимым спадом выхода К+ (т.е. снижением выходящего тока) при деполяризации мембраны. IK1 является выпрямляющим и регулирует токи К+, которые могут изменять уровень Еm.
При более отрицательном Еm проводимость IK1 намного больше, чем таковая для каких-либо других токов. Таким образом это сдерживает Еm покоя на уровне, близком к потенциалу реверсии К+ (ЕK). Плотность IK1 в кардиомиоцитах желудочков намного выше, по сравнению с предсердиями, что является особенностью этих клеток и защищает их от деполяризации мембраны в диастолу, а также от пейсмейкерной активности.
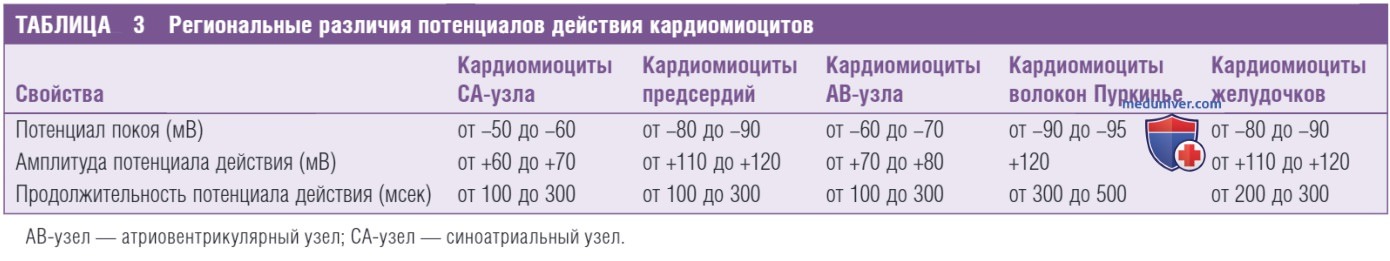
В кардиомиоцитах СА-узлов и АВ-узлов IK1 почти отсутствует, что обусловливает наличие у них относительно большего потенциала диастолической деполяризации, по сравнению с кардиомиоцитами предсердий и желудочков (табл. 3). Выходящие токи К+ препятствуют деполяризации мембраны (сохраняя разность потенциалов на одном уровне) и иногда этот эффект называют эффектом фиксации потенциала.
Особым свойством токов через каналы Kir является необычная зависимость выпрямления от внеклеточной концентрации К+. В частности, с повышением уровня внеклеточного К+ соотношение тока IK1 к напряжению смещается почти одновременно с ЕK и ведет к феномену перехода ("crossover", зависимость скорости открытия канала от потенциала, из экспоненциальной — в линейную).
Важное следствие этого феномена — повышение проводимости К+ при потенциалах, более положительных, чем точка перехода, вместо ожидаемого ослабления в результате его возрастающей внеклеточной концентрации.
Еm покоя также поддерживается Na+-K+ аденозинтрифосфатазой (АТФазой) (K+/Na+-насосом), благодаря чему обеспечивается определенный трансмембранный градиент концентрации Na+ и К+. В физиологических условиях K+/Na+-насос переносит 2 К+ в клетку и 3 Na+ из клетки против их градиентов концентрации с затратой одной молекулы АТФ.
Поскольку стехиометрия движения ионов не равна 1:1, К+/Na+-насос является электрогенным и генерирует перемещение положительных зарядов из клетки (т.е. выходящий ток). При повышении частоты сердечных сокращений повышается частота перекачивания ионов К+/Na+-насосом для поддержания градиентов ионов на должном уровне. Таким образом, при каждой деполяризации происходит регуляция внутриклеточного входа Na+ и потери К+.
Во время поляризации и гиперполяризации Em потенциал-зависимые Са2+-каналы закрыты, поэтому Са2+ напрямую не участвует в поддержании Еm. Однако изменения во внутриклеточной концентрации свободного Са2+ могут влиять на другие значения проводимости мембраны. Повышение внутриклеточного уровня Са2+ может вызывать активацию Na+/Са2+-обменника (INa-Ca), который переносит 3 Na+ против 1 Са2+.
Направление перемещения этих ионов будет зависеть от внеклеточной и внутриклеточной концентраций Na+ и Са2+ и разности Еm. Этот ионный обменник при Em покоя и спонтанном высвобождении Са2+ из саркоплазматического ретикулума обеспечивает массивный вход Na+, и, вероятно, вызывает временную деполяризацию мембраны.
б) Фаза 0: подъем-быстрая деполяризация. Если кардиомиоциты предсердий, желудочков или волокон Пуркинье возбуждаются при действии электрических стимулов от соседних клеток, их мембрана из Еm покоя (приблизительно -85 мВ) переходит в состояние деполяризации. При этом активируются Na+-каналы, которые в состоянии покоя клетки находятся в инактивированном состоянии, т.е. не способны к быстрому перемещению большого количества Na+ в клетку (входящий INa) по элетрохимическому градиенту.
Возбужденная вследствие повышенной проходимости для Na+ мембрана больше не ведет себя как калиевый электрод (будучи проницаемой исключительно для К+), но больше сходна с натриевым электродом, и Ет смещается в сторону ENa (см. табл. 2). Если возбуждающий стимул приводит к деполяризации мембраны и значение Еm выходит за пределы порогового уровня и активируются Na+-каналы (приблизительно при -65 мВ), активированный INa становится регенеративным и больше не зависит от инициирующего деполяризацию стимула.
Вследствие этого, вход Na+ приводит к дальнейшей деполяризации мембраны, что еще больше увеличивает проводимость для Na+ и приводит к еще большему току Na+ в клетку (т.е. становится «регенеративным»).
В физиологических условиях одновременно с активацией Na+-каналов начинается и их инактивация (закрытие каналов), но поскольку инактивация происходит немного медленнее активации, каналы остаются некоторое время (менее 1 мсек) открытыми в фазе 0 потенциала действия для проведения INa, после чего закрываются.
Кроме того, вход Na+ повышает положительный заряд с внутренней стороны мембраны и приводит к ослаблению движущей силы для перемещения Na+. Когда значение мембранного потенциала достигает ENa, вход Na+ прекращается.
Скорость деполяризации во время фазы 0 (т.е. максимальная скорость изменения напряжения во времени [dV/dtmax]) можно соотнести со скоростью и количеством входящих Na+ и показателем скорости проведения для распространяющегося потенциала действия (см. далее).
Порог активации ICaL составляет от -30 до -40 мВ. Хотя ICaL активируется во время фазы 0 регенеративной деполяризацией, вызванной быстрым INa, ICaL намного меньше, чем максимальный INa. Более того, амплитуда ICaL не является максимальной на уровне пика потенциала действия вследствие зависимой от времени естественной активации ICaL, также, как и слабая движущая сила (Еm - ЕCa) для ICaL.
Таким образом, ICaL вносит небольшой вклад в потенциал действия, пока быстрый INa не будет инактивирован после завершения фазы 0. В результате этого ICaL приводит к плато потенциала действия, что может быть зарегистрировано в кардиомиоцитах предсердий, желудочков, пучка Гиса и волокон Пуркинье. С другой стороны, ICaL играет существенную роль в подъеме потенциала действия кардиомиоцитов с медленным ответом в частично деполяризованных клетках, в которых инактивированы быстрые Na+-каналы.
в) Фаза 1: ранняя реполяризация. Фаза 1, ранняя реполяризация, следует за фазой 0. Во время фазы 1 мембрана быстро реполяризуется, доходя до 0 мВ (ранняя фаза), что связанно как с инактивацией INa, так и с одновременной активацией некоторых выходящих токов. За фазу 1 ответственен главным образом временный выходящий ток К+ (Ito). Ito быстро активируется (менее 10 мсек) при деполяризации и затем быстро инактивируется (от 25 до 80 мсек для быстрого компонента Ito [Ito,f], и от 80 до 200 мсек для медленного компонента Ito [Ito,s]).
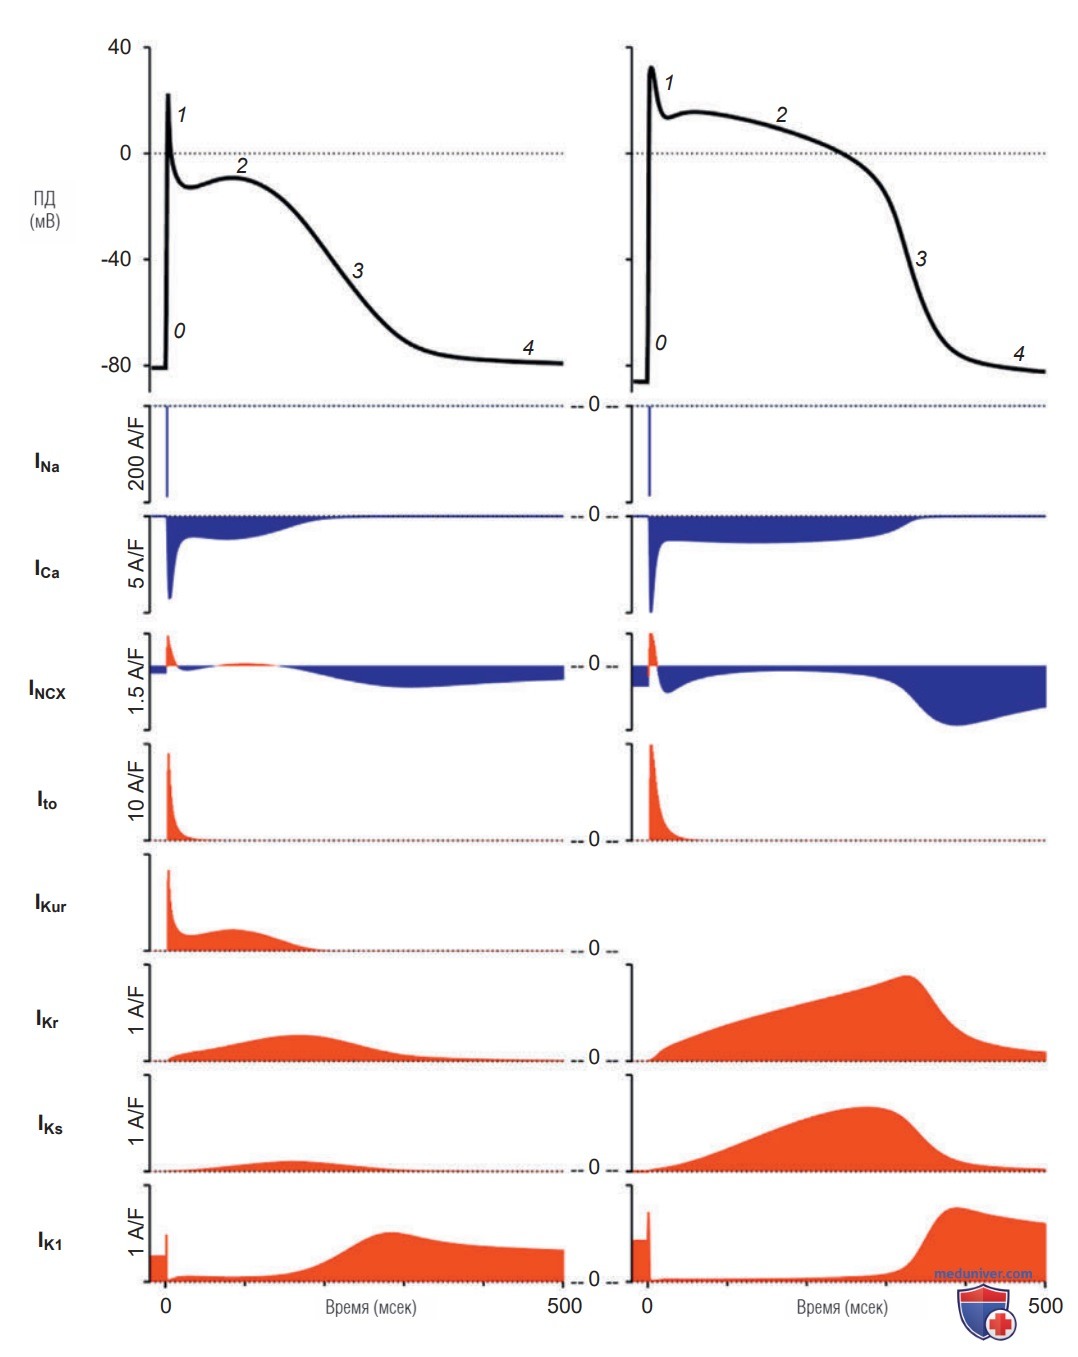
Реполяризация мембраны частично обусловлена входом К+ через каналы Ito, таким образом, формируется быстрая реполяризация (фаза 1) потенциала действия и устанавливается начальный уровень плато (фаза 2) (см. рис. 1). Кроме того, ранней реполяризации, вероятно, также способствует выходящий ток Na+ через Na+/Ca2+-обменник, работающий в реверсивном режиме.
Рисунок 1. Вклад деполяризующих входящих и реполяризующих выходящих токов в потенциал действия (ПД) предсердий и желудочков. Сверху показаны кардиомиоциты предсердий (слева) и желудочков (справа). Обозначены пять фаз ПД: 0 — подъем ПД вверх представляет собой деполяризацию мембраны; 1 — начальная реполяризация; 2 — фаза плато; 3 — поздняя реполяризация; 4 — фаза покоя (диастолическая). Скорость изменения ПД прямо пропорциональна сумме основных трансмембранных ионных токов (снизу). Входящие токи (синий цвет) вызывают деполяризацию мембраны, в то время как выходящие токи (красный цвет) способствуют реполяризации. ПД кардиомиоцитов желудочков обычно имеет более длительную продолжительность, более высокий уровень потенциала плато (фаза 2) и более отрицательный мембранный потенциал покоя (фаза 4) по сравнению с ПД кардиомиоцитов предсердий. ICa — ток Ca2+ через каналы L-типа; IK1 — ток К+ внутреннего выпрямления; IKr — быстро активируемый ток К+ задержанного выпрямления; IKs — медленно активируемый ток К+ задержанного выпрямления; IKur — сверхбыстро активируемый К+ ток задержанного выпрямления; INa — ток Na+; INCX — Na+/Ca2+-обменник; Ito — выходящий ток К+. ПД — потенциал действия
г) Фаза 2: плато. Фаза 2 (плато) представляет собой точный баланс между деполяризирующими входящими токами (ICaL) и небольшой остаточный компонент INa) и реполяризующими выходящими токами (сверхбыстро активируемый [IKur], быстро активируемый [IKr], и медленно активируемый [IKr] К+ токи задержанного выпрямления) (см. рис. 1).
Фаза 2 — наиболее продолжительная фаза потенциала действия, продолжающаяся от десятков (в предсердиях) до сотен миллисекунд (в пучке Гиса, волокнах Пуркинье и желудочках). Плато является уникальной фазой среди фаз потенциала действия всех возбудимых клеток и представляет собой фазу входа в клетку Са2+. Эта фаза наиболее четко отличает потенциал действия кардиомиоцита от коротких потенциалов действия поперечно-полосатых мышечных волокон и нейронов.
Деполяризация мембраны инициирует активацию ICaL, который в основном ответственен за плато потенциала действия и определяет продолжительность этой фазы. ICaL также является связующим звеном между деполяризацией мембраны и сокращением кардиомиоцита. Са2+-каналы L-типа активируются при деполяризации мембраны до уровня потенциала положительнее -40 мВ. ICaL достигает максимума при Еm, равном от 0 до +10 мВ и имеет тенденцию к реверсии при от +60 до +70 мВ с последующей куполообразной формой кривой на графике, отражающей взаимодействие ток-напряжение.
В фазу 2 также вносят незначительный вклад Na+-каналы. Некоторые Na+-каналы после фазы 0 потенциала действия не могут инактивироваться, длительно открываются, или их повторное открытие происходит через разные, продолжительные латентные периоды, в пределах сотен миллисекунд времени, что приводит к небольшому входу INa (менее чем 1% максимума INa). Этот следовый или «поздний» INa (INaL)/ наряду с ICaL способствует поддержанию плато потенциала действия.
Деполяризация мембраны также приводит к активации IKr и IKs. IKr при этом активируется относительно быстро (в пределах 10 мсек), что способствует диффузии К+ из клетки по электрохимическому градиенту. Однако вслед за этим происходит очень быстрая потенциал-зависимая инактивация. Таким образом, лишь небольшое количество ионных каналов остаются открытыми, тогда как большинство остается в неактивированном состоянии, и они не способны к проведению возбуждения. Быстрая потенциал-зависимая инактивация ограничивает выходящий положительно заряженный ток через каналы и, таким образом, способствует поддержанию плато потенциала действия.
Плато потенциала действия необходимо для сокращения кардиомиоцита и предотвращает его преждевременное возбуждение. В конце фазы 2 потенциал становится менее положительным и каналы быстро восстанавливаются после инактивации. Такой процесс приводит к прогрессирующему увеличению амплитуды IKr во время фаз 2 и 3 потенциала действия с максимумом выходящего тока перед конечной фазой быстрого спада.
Также в поддержание фазы 2 вносит вклад IKs, который приблизительно в 10 раз больше, чем IKr. IKs активируется при деполяризации мембраны от -30 мВ и выше, и постепенно усиливается во время плато, т.к. скорость его активации крайне мала, медленнее, чем у других токов К+. В действительности, стабильная амплитуда IKs достигается только при очень продолжительной деполяризации мембраны.
Таким образом, вклад IKs в общий реполяризующий ток в фазу плато является наиболее поздним, особенно при продолжительном потенциале действия. Важно отметить, что хотя активация IKs происходит медленно относительно длительности потенциала действия, инактивация IKs происходит также медленно. IKs усиливается при повышении частоты сердечных сокращений, т.к. при укороченной диастоле происходит замедление инактивации каналов и она становится неполной. Так, при коротком потенциале действия многие каналы IKs остаются открытыми, что способствует ускорению реполяризации.
Таким образом, IKs играет значительную роль в частотно-зависимом укорочении длительности потенциала действия кардиомиоцита.
IKur выявлен в предсердиях, но не обнаружен в желудочках человека, таким образом, этот ток является преобладающим током задержанного выпрямления, который поддерживает реполяризацию предсердий и лежит в основе укороченного потенциала действия в предсердиях. Во время деполяризации в пределах фазы 2 IKur быстро активируется и проявляет внешнее выпрямление, однако медленно инактивируется в течение происходящего потенциала действия.
Незначительный вклад во время фазы 2 вносят Na+/Ca2+-обменник, работающий в прямом режиме (3 входящих Na+ против 1 выходящего Са2+) и Na+/К+-насос.
Важно подчеркнуть, что во время фазы 2 проводимость для всех ионов падает до довольно низких уровней. Таким образом, чтобы вызвать сходные изменения Em, необходимо меньшее изменение тока при уровне потенциала, близкого к плато, чем при уровне потенциала, близкого к потенциалу покоя. Вследствие внутреннего выпрямления IK1 (т.е. спада потенциал-зависимого выходящего тока и, таким образом, снижения выходящего тока) во время деполяризации мембраны проводимость для К+ во время плато падает, несмотря на значительные движущие силы, связанные с электрохимическим градиентом К+, во время фаз 0, 1, 2 потенциала действия.
Это свойство позволяет мембране деполяризироваться вслед за активацией Na+-каналов, замедлять реполяризацию мембраны и поддерживать более продолжительный потенциал действия кардиомиоцита. Также это обеспечивает энергетическую эффективность для генерации потенциала действия.
д) Фаза 3: конечная быстрая реполяризация. Фаза 3 представляет собой фазу быстрой реполяризации, которая возвращает Еm к его значению в состоянии покоя. Фаза 3 происходит в результате повышающейся проводимости для выходящего быстро активируемого К+ тока задержанного выпрямления и выходящего медленно активируемого К+ тока задержанного выпрямления (IKr и IKs соответственно), токов внутреннего выпрямления К+ (IK1 и токи К+, активируемые ацетилхолином [IKACh]), и зависимая от времени инактивация ICaL (см. рис. 1).
Конец реполяризации во время фазы 3 представляет собой выход К+ через каналы IK1, которые открываются при потенциале -20 мВ.
е) Фаза 4: восстановление мембранного потенциала покоя. Во время потенциала действия Na+ и Са2+ входят в клетку, что приводит к деполяризации мембраны. Несмотря на быструю реполяризацию мембраны вследствие выхода К+, необходимо восстановление трансмембранного градиента концентрации до исходного уровня. Этому способствует Na+/К+-АТФаза (K+/Na+-насос, через который 2 К+ входят в клетку, а 3 Na+ выходят), а также Na+/Са2+-обменник (INa-Ca, который переносит 3 Na+ в обмен на 1 Са2+).
Снижение Са2+ в цитозоле во время диастолы достигается путем его выведения через Na+/Са2+-обменник, а также благодаря обратному захвату Са2+ в саркоплазматический ретикулум при активации кальциевой помпы Са2+-АТФазы сарко/эндоплазматического ретикулума (SERCA). В условиях покоя кардиомиоциту человека для деполяризации, сокращения, расслабления и восстановления требуется приблизительно 600 мсек.
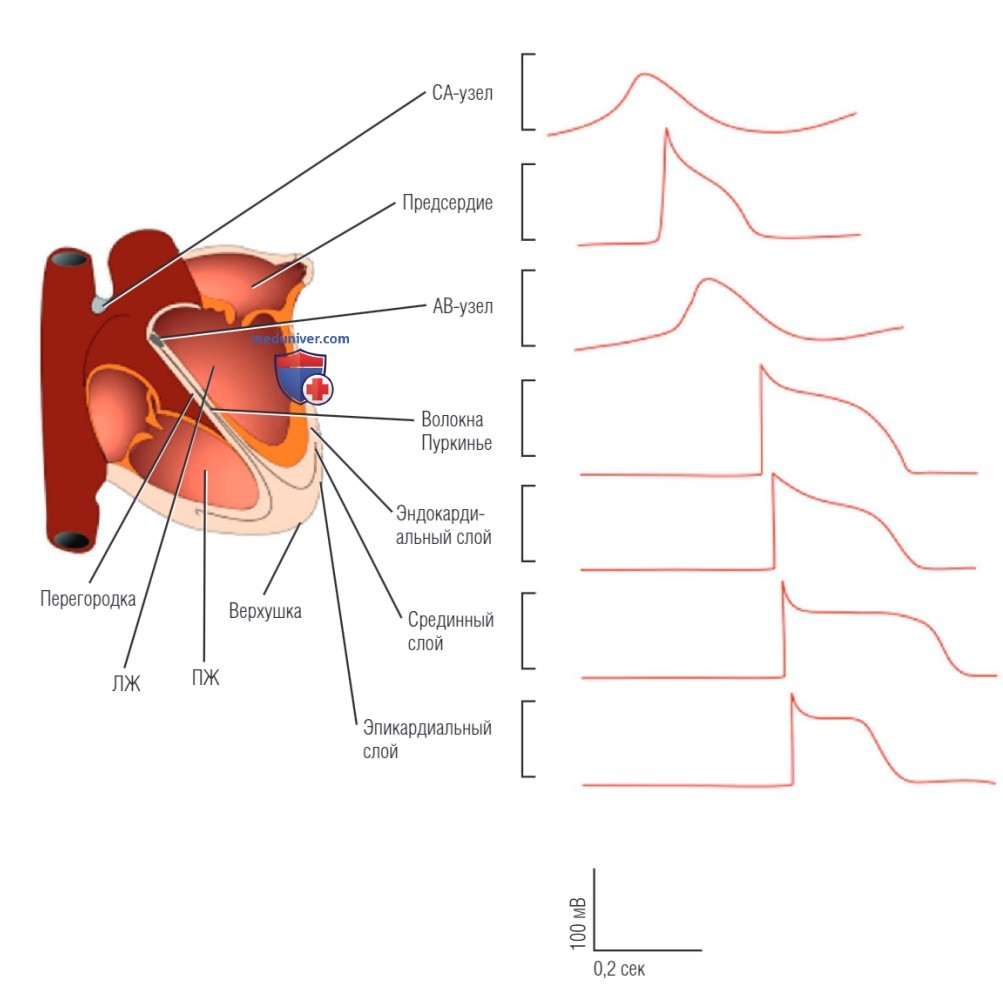
ж) Изменения потенциала действия в разных отделах сердца. В кардиомиоцитах, локализованных в различных областях сердца, наблюдается значительная разница в уровнях экспрессии ионных каналов, что отражается на продолжительности и форме потенциала действия. Потенциалы действия в кардиомиоцитах предсердий и желудочков имеют различные характеристики, также как и потенциалы действия в кардиомиоцитах миокарда желудочков в эндокардиальном, срединном и эпикардиальном слоях (см. рис. 2).
Рисунок 2. Формы волн потенциалов действия, смещенные во времени для отражения временной последовательности распространения возбуждения, различаются в разных областях сердца. АВ-узел — атриовентрикулярный узел; ЛЖ — левый желудочек; ПЖ — правый желудочек; СА-узел — синоатриальный узел
з) Различия потенциала действия предсердий и желудочков. Кардиомиоциты желудочков в покое, по сравнению с кардиомиоцитами предсердий, поддерживают более гиперполяризованный Em (приблизительно -85 мВ по сравнению с -80 мВ, соответственно). Кроме того, у кардиомиоцитов желудочков потенциал действия более длительный, плато происходит при более деполяризованном Еm (приблизительно +20 мВ) и кривая фазы 3 реполяризации круче по сравнению с таковой у кардиомиоцитов предсердий (см. табл. 3).
Различия морфологии потенциалов действия кардиомиоцитов предсердий и желудочков связаны главным образом с различиями в плотности ионных токов и экспрессии ионных каналов (особенно К+-каналов) этих кардиомиоцитов. Плотность токов IKr и IKs в предсердиях и желудочках сходная, тогда как IKur определяется только в предсердиях у человека. В действительности, во время реполяризации предсердий у человека преобладает ток задержанного выпрямления IKur, тогда как IKr и IKs вносят небольшой вклад в реполяризацию мембраны.
Кроме того, в кардиомиоцитах предсердий плотность Ito в 2 раза выше по сравнению с таковой в кардиомиоцитах желудочков. Экспрессия подтипов Ito (Ito,f и Ito,s) в сердце также различается. В предсердиях у человека экспрессируется в основномподтип Ito,f. Тогда как в желудочках больше экспрессируется Ito,s, а Ito,f — меньше по сравнению с предсердиями.
Значительно более высокая плотность Ito,f, наряду с экспрессией IKur, способствует усилению ранней фазы реполяризации и приводит к большему снижению потенциала до уровня плато и укорочению длительности потенциала действия в кардиомиоцитах предсердий по сравнению с желудочками.
В кардиомиоцитах желудочков намного выше плотность IK1 по сравнению с предсердиями, и это объясняет резкое падение потенциала в фазу реполяризации в кардиомиоцитах желудочков (тогда как более значительный IK1 играет большую роль в активации конечной фазы реполяризации) и менее выраженную фазу в кардиомиоцитах предсердий. Кроме того, более высокий уровень экспрессии каналов IK1 лежит в основе гиперполяризованного Em в покое в кардиомиоцитах желудочков, а также защищает кардиомиоциты желудочков от чрезмерной пейсмейкерной активности.
Некоторые другие К+-каналы характерны для предсердий и потенциально вносят значительный вклад в потенциалы действия кардиомиоцитов предсердий, но не желудочков. К ним относятся IKACh, двухпористые К+-каналы (К2P) и низкопроводные К+-каналы, активируемые Са2+ (SK).
и) Внутрижелудочковые различия потенциала действия. Потенциал действия различается в разных слоях миокарда, между левым и правым желудочком, от верхушки к основанию желудочков.
Трансмуральные различия желудочковой реполяризации обеспечиваются тремя основными типами кардиомиоцитов: эпикардиальным, срединным и эндокардиальным слоями миокарда. Эти различия определяют волнообразную форму потенциалов действия. Выраженными различиями морфологии кардиомиоцитов этих трех слоев являются выемка фазы 1 и форма «пик и купол» потенциала действия кардиомиоцитов эпикардиального и срединного слоев, по сравнению с кардиомиоцитами эндокардиального слоя. Длительность потенциала действия у кардиомиоцитов эндокардиального слоя больше, чем у кардиомиоцитов эпикардиального слоя. Самый длинный потенциал действия у кардиомиоцитов срединного слоя миокарда.
Особая выемка фазы 1 в потенциале действия волнообразной формы кардиомиоцитов эпикардиального слоя определяется региональными различиями в плотности Ito в миокардиальной стенке. Плотность Ito намного выше в эпикардиальном и срединном слоях миокарда желудочков по сравнению с эндокардиальным слоем. В желудочках экспрессируются как Ito,f так и Ito,s, при этом Ito,f имеет большую значимость в эпикардиальном и срединном слоях по сравнению с эндокардиальным слоем, тогда как Ito,s присутствует главным образом в эндокардиальном слое и клетках волокон Пуркинье.
Отчетливая Ito-зависимая выемка фазы 1 потенциала действия в кардиомиоцитах эпикардиального слоя, по сравнению с эндокардиальным слоем желудочков, формирует трансмуральный электрический градиент во время ранней реполяризации, что регистрируется на электрокардиограмме (ЭКГ) как волна J или элевация точки J.
Некоторые экспериментальные исследования на препаратах ткани убедительно свидетельствуют о наличии субпопуляции клеток в срединном слое миокарда (называемых М-клетками), которые отличаются особенными электрофизиологическими характеристиками. Однако эксперименты на здоровом сердце не подтвердили факт наличия этих клеток. Предполагаемые М-клетки, по-видимому, имеют более длительный потенциал действия, распространяющийся вдоль миокардиальной стенки, что в значительной степени объясняется более слабым током IKs, но более сильными поздними токами INa и токами через Na+/Ca2+-обменники в этих клетках.
Таким образом, предполагают, что М-клетки служат электрофизиологической основой трансмуральной желудочковой дисперсии реполяризации и волны Т на поверхностной ЭКГ, причем пик волны Т (на препаратах ткани) совпадает с концом реполяризации кардиомиоцитов эпикардиального слоя, а конец волны Т совпадает с окончанием реполяризации М-клеток. Эти клетки, по-видимому, играют важную роль в аритмогенезе при различных патологических состояниях, таких как удлиненный QT и синдром Бругада, вторичных по отношению к повышению трансмуральных градиентов реполяризации. Однако роль этих клеток при физиологических условиях остается противоречивой.
Помимо трансмурального градиента потенциала действия, который существует между тремя слоями миокарда в левом и правом желудочках, длительность потенциала действия в кардиомиоцитах правого желудочка (ПЖ) в целом короче, и морфология «пик и купол» более выражена по сравнению с левым желудочком (ЛЖ). Эти различия соотносят с повышенной плотностью Ito в кардиомиоцитах правого желудочка по сравнению с левым.
Также имеются доказательства различий в потенциалах действия в желудочках в направлении от основания к верхушке. По-видимому, продолжительность потенциала действия короче у кардиомиоцитов в основании ЛЖ по сравнению с верхушкой. Вероятно это объясняется более значительными Ito и IKs в кардиомиоцитах верхушки по сравнению с основанием.