Нормальное развитие амфибий - кратко с точки зрения эмбриологии
Основа. Амфибии (тритон, саламандра, лягушка) откладывают свои яйца (икру) на травах и тростниках в мелкой воде. Яйца развиваются внутри защитной желатиновой оболочки, пока зародыши не станут плавающими личинками. Вылупившиеся личинки живут в воде и дышат через жабры. После метаморфоза взрослые животные приспосабливаются к жизни на земле и дышат через легкие.
Раннее развитие амфибий
Раннее развитие амфибий:
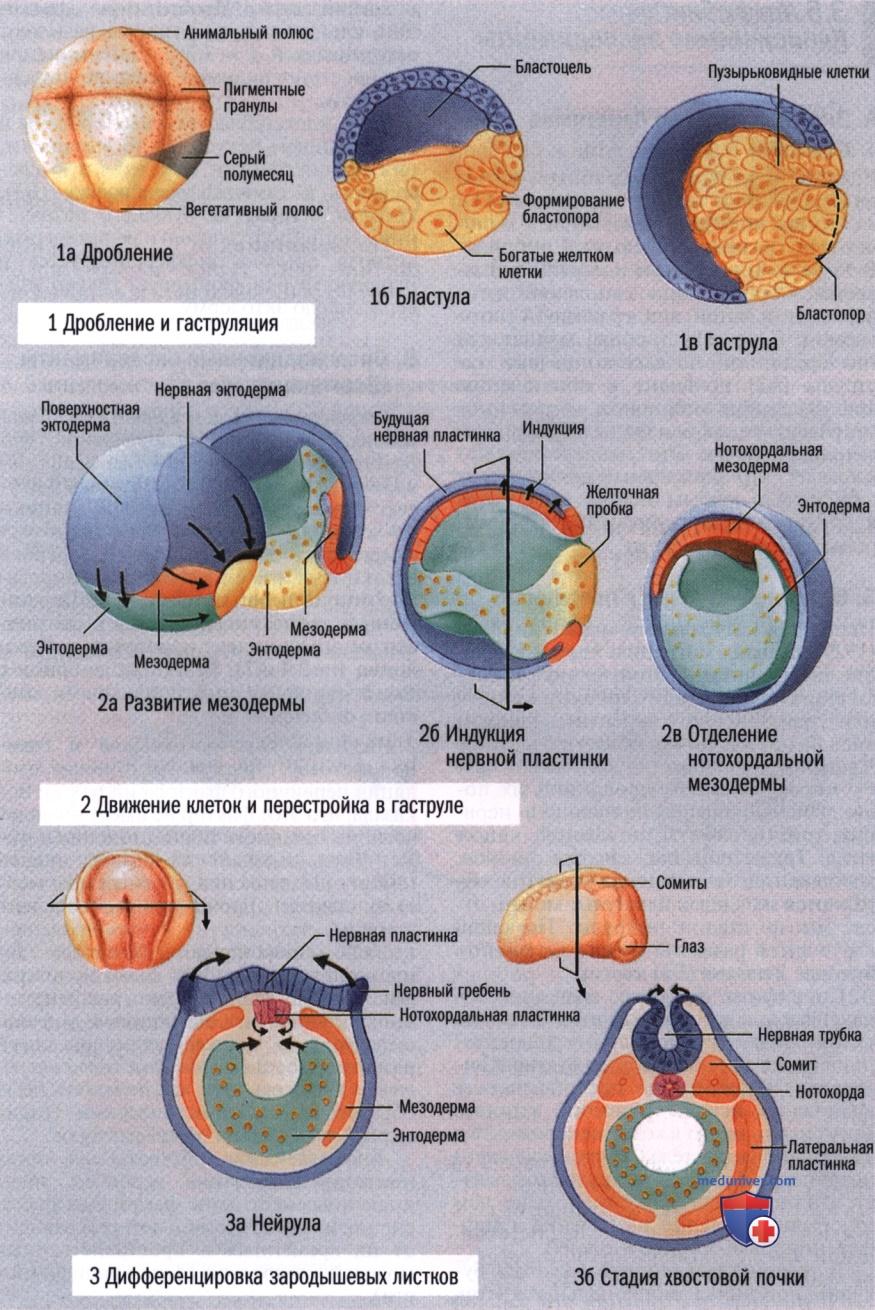
1. Дробление и гаструляция. Яйца размером с булавочную головку содержат большую массу желтка, который концентрируется на вегетативном полюсе. Несмотря на большое количество желтка, дробление яйца — полное. Бластомеры на вегетативном полюсе больше, чем таковые на аномальном (1а). Стенка бластулы многослойная (1б).
На вегетативном полюсе богатые желтком бластомеры выпячиваются в бластоцель. Бластопор возникает в зоне с более легкой пигментацией (серый полумесяц) напротив места проникновения сперматозоида. Здесь связь между эпителиоцитами ослабевает, и клетки мигрируют амебовидными движениями в бластоцель. С помощью своих тонких задних полюсов они тянут губу бластопора внутрь (пузырьковидные клетки) (1в).
2. Движение клеток и перестройка в гаструле. Особенности гаструляции у амфибий хорошо видны вследствие медлительности богатых желтком клеток на вегетативном полюсе. Гаструляция начинается с включения будущего мезодермального материала в серповидную дорсальную губу бластопора (2а). Как только архэнтерон инвагинирует, целостность эпителия в вентральной губе бластопора нарушается.
Большие, богатые желтком клетки остаются в виде желточной пробки (2б) в отверстии бластопора. К концу гаструляции некоторое количество мезодермы также включается в вентральную губу бластопора и проталкивается вперед между желточной пробкой и эктодермой.
Будущая мезодерма инвагинирует вокруг дорсальной губы бластопора и располагается в области свода архэнтерона (2а). Мезодерма в своде архэнтерона индуцирует формирование над собой эктодермальной выстилки в виде нервной пластинки (2б).
У лягушек (Anurans) мезодерма и энтодерма соединяются в архэнтероне в течение гаструляции (16); мезодермальная пластинка отделяется позже. У саламандр (Urodeles) мезодерма и энтодерма разделяются в начале гаструляции. После отделения от энтодермы мезодерма формирует открытую вентрально «раковину», которая инвагинирует по краям между эктодермой и энтодермой (2в).
3. Дифференцировка зародышевых листков. В нейруле (3а) мезодерма преобразуется в нотохорду (расположенную в срединной плоскости) — материал для сомитов и боковых пластинок.
На стадии хвостовой почки (3б) края нервной пластинки поднимаются и формируют нервные складки, которые впоследствии сливаются в области нервного гребня. Этот процесс дает начало нервной трубке с центральным каналом, которая отделяется от поверхностной эктодермы. В области туловища нервная трубка становится спинным мозгом; в области головы формируются мозговые пузыри.
После слияния нервных складок начинается миграция клеток, направленная кнаружи от нервного гребня. Нотохорда дифференцируется в крепкий, упругий осевой стержень с жесткой коллагеновой оболочкой и раздутыми вакуолизированными клетками. Параксиальная мезодерма организуется в сомиты, закладывая основу для метамерного строения тела на позвоночные сегменты и мышечные пластинки.
Латеральная мезодермальная пластинка растет вокруг кишечной трубки в виде непрерывной пластинки; целомическое пространство формируется во вторую очередь. Как только комплекс нотохорда — мезодерма (2а) отделяется от свода архэнтерона, края энтодермы соединяются, формируя дефинитивный кишечный тракт.