Гомеостаз железа в организме человека - по руководству США
а) Эволюционные аспекты регуляции железа и его влияния на метаболизм. Многие организмы развивались под влиянием недостатка топлива, поэтому системы, контролирующие баланс энергии, в основном отвечают на данный вид давления.
Это может быть одной из причин, по которой люди не настолько эффективно адаптируются к относительно недавнему явлению избытка пищи, и вследствие этого они ищут еще больше пищи, даже при нормальном или избыточном насыщении. Другим механизмом эволюции развития человека, особенно после аграрной революции, стал недостаток железа.
Наиболее распространенным дефицитом микроэлементов на планете является дефицит железа, поражающий приблизительно 2 млрд человек, в основном в развивающихся странах. Учитывая данный фактор, наиболее распространенными мутациями у человека, отрицательно влияющими на гомеостаз железа, являются мутации белка человеческого гемохроматоза (высокое железо), вызывающие наследственный гемохроматоз.
Как описано ниже, наиболее часто мутации белка человеческого гемохроматоза встречаются в северной Европе, где употребление железа с пищей является низким. На основании высокой аллельной частоты в данных популяциях, которая составляет приблизительно 5-10%, считается, что мутация оказывает выборочное положительное влияние.
Поскольку она смягчает отрицательную реакцию системы, контролирующей всасывание железа в кишечнике и доступность железа в тканях, она позволяет переносчикам поглощать избыток железа в редких случаях при доступности пищи, богатой железом.
Эволюционное давление в виде дефицита железа противоречит здравому смыслу, учитывая избыток железа, которое является наиболее распространенным элементом в мире и составляет 5,6% земной коры. Возможным объяснением является то, что у низших организмов, непосредственно подверженных воздействию железа, развились высококонтролируемые системы для ограничения его захвата в качестве защиты от потенциального окислительного повреждения.
В то же время организмы эволюционировали для получения пользы от железа, например для окисления топлива, других окислительно-восстановительных реакций и доставки кислорода. В действительности роль железа в клеточных процессах может быть не полностью оценена — до такой степени, что имеются данные, что сотни белков могут переносить простетические группы железа, при этом железо обычно связывается с гемом или кластерами железа-серы.
Эта потребность в железе при потенциальной опасности привела к возможности комплексной системы четко регулировать его уровни в тканях, его распределение в тканях и биодоступность, рассматриваемые в отдельной статье на сайте - просим Вас пользоваться формой поиска по сайту выше. Значимость железа также проявляется в быстрой эволюции у приматов систем предотвращения использования железа паразитирующими организмами и в одинаково быстрой эволюции данных организмов с развитием способностей нейтрализовать данную защиту.
Следствием этого является появление в эволюции важного звена между доступностью железа и метаболизмом. Выбор топлива у дрожжевых грибов, например, тесно и взаимно связан с железом: потенциально опасный атом не импортируется, если отсутствует необходимость в окислении топлива.
И аналогичным образом сложные системы, необходимые для окисления топлива, не возникают, если нет доступного железа. Значимость и одновременная опасность железа также подтверждаются фактом, что у дрожжевых грибов приблизительно 50 генов отвечают за импорт, сопровождение и хранение железа. Многие из данных связей сохраняются и у высших эукариотов.
Хотя дефицит железа также приводит к метаболическим последствиям включая ожирение, возможно, связанное с ограниченной способностью к окислению топлива, в данном обзоре будет сделан акцент на влиянии избытка железа на СД и сопутствующие состояния.
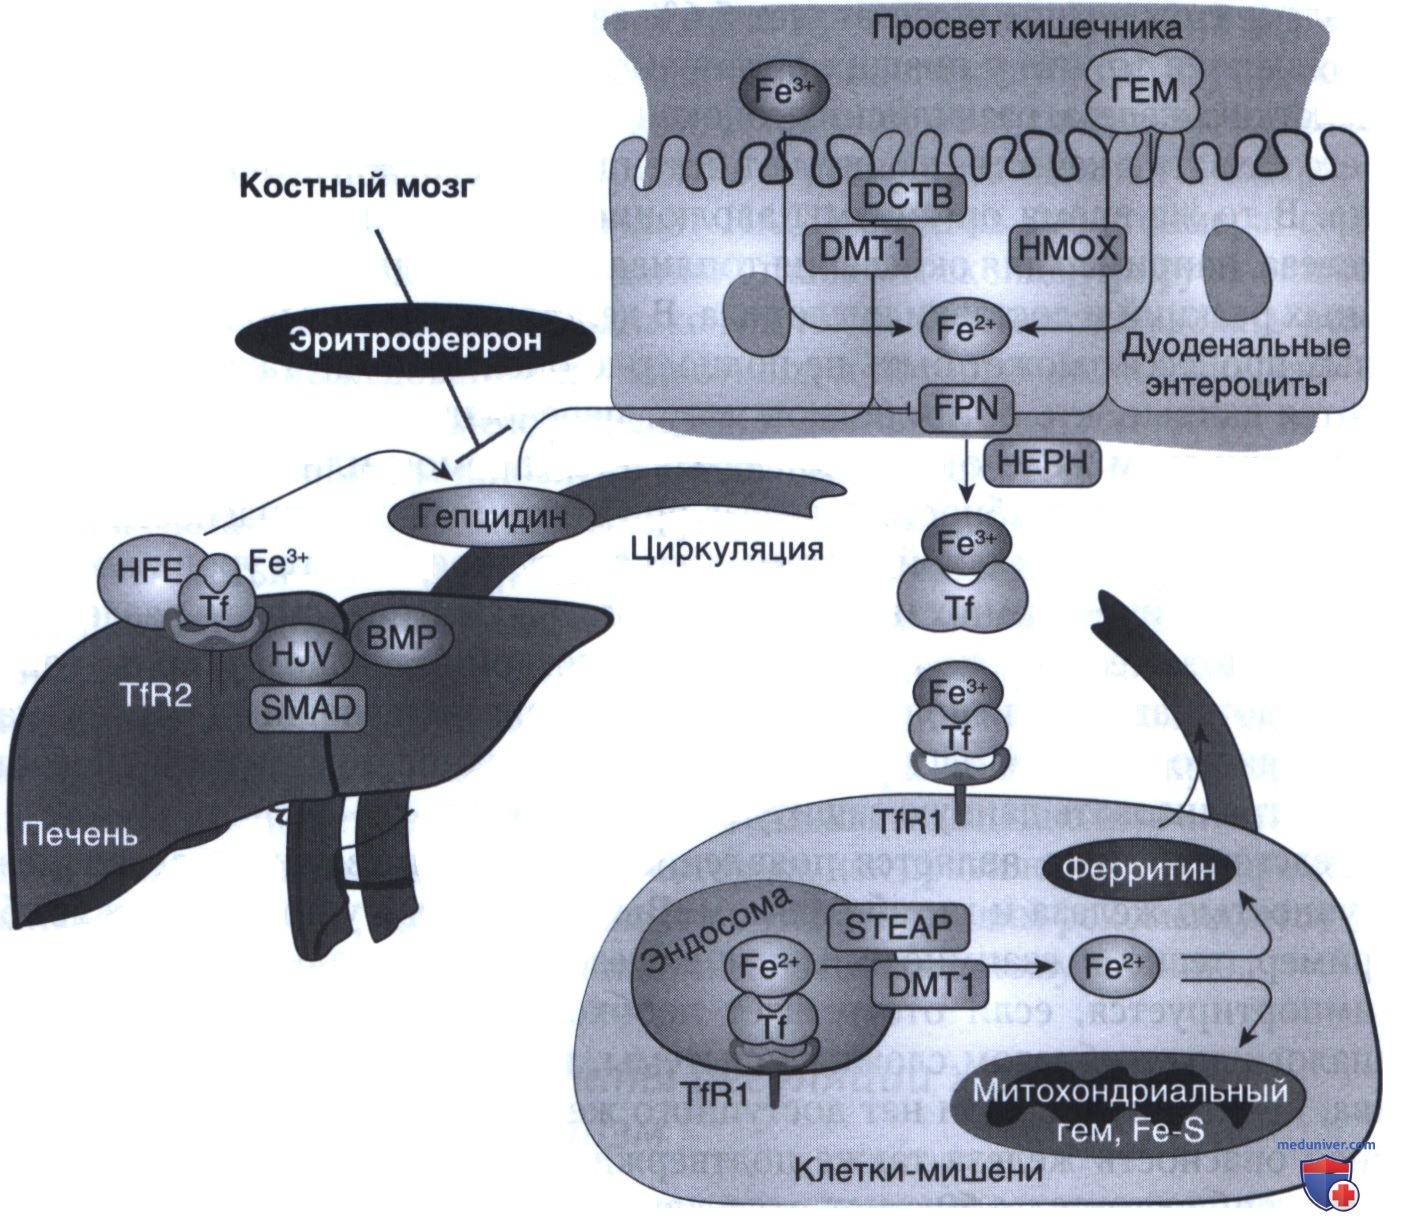
б) Механизм гомеостаза железо. Системный и клеточный метаболизм железа стали предметом превосходных обзоров, опубликованных недавно, и лишь поверхностно затронуты здесь (рис. ниже). Свободное трехвалентное железо в кишечнике (Fe3+) восстанавливается до двухвалентного железа Fe2+ с помощью дуоденального цитохрома В и проникает в энтероциты DS посредством бивалентного транспортера ионов металла 1 и, возможно, других переносчиков.
Гомеостаз железа. Железо поступает в циркулирующую кровь из энтероцитов кишечника (вверху справа) через канал железа ферропортина (FPN), где оно связывается с трансферрином сыворотки крови (Tf). Таргетные клетки (внизу справа) захватывают железо через рецепторы трансферрина (TfR) для утилизации или хранения. Трансферринсвязанное железо также взаимодействует с комплексом рецепторов в печени для образования белка гепцидина, который уменьшает количество ферропортина для завершения отрицательный регуляторный цикл всасывания железа. BMP — костный морфогенный белок; DCTB — дуоденальный цитохром В; DMT1 — транспортер ионов двухвалентных металлов-1; FE-S — кластер «железо-сера»; НЕРН — гефестин; HFE — высокое содержание железа; HJV — гемоювелин; НМОХ — гемоксигеназа; SMAD — малый и материнский по отношению к декапентаплегическому трансдукторы сигнализации трансформирующего фактора роста-β; STEAP — 6-трансмембранный эпителиальный антиген предстательной железы)
Алиментарный гем непосредственно всасывается в энтероциты, где железо высвобождается гемоксигеназой. Двухвалентное железо выходит из энтероцитов через канал экспорта железа — ферропортин. После окисления гефестином трехвалентное железо Fe3+ связывается с трансферрином в крови, которое, в свою очередь, связывается с рецепторами трансферрина на поверхности таргетных клеток.
В большинстве клеток (рис. выше, нижний правый) после эндоцитоза рецептора трансферрина 1 и окисления эндосом железо высвобождается, восстанавливается STEAP (6-трансмембранным эпителиальным антигеном предстательной железы) и попадает в цитозоль через транспортер ионов двухвалентных металлов-1, где применяется (например, для синтеза гема или Fe-S-кластера в митохондриях) или, если в избытке, секвестрируется ферритином.
Апоферритин, секретируемый в циркулирующую кровь, является показателем запасов железа в тканях, хотя триггер для данной секреции по сравнению с секвестрацией большего количества железа неизвестен. Внутриклеточная миграция железа является намного более сложной, чем показано на рисунке. Например, железо во многом контролируется и связывается со своими различными мишенями в виде двухвалентного железа или после синтеза кластеров «железо-сера» с помощью механизмов, которые до сих пор изучаются.
Печень является одним из основных органов, регулирующих системный баланс ионов железа. В печени трансферрин связывает рецептор трансферрина 2 и белок гемохроматоза и, взаимодействуя с сигнализацией через гликофосфатидилинозитолсвязанный белок гемоювелин, костные морфогенетические белки и трансдукторы сигнализации трансформирующего фактора роста-β, образуется 21-мерный пептид гепцидин.
Гепцидин индуцирует поглощение клеткой и распад гена ферропортина в энтероцитах, тем самым завершая цикл регуляции с отрицательной обратной связью. Гепцидин и ферритин также индуцируются воспалительными цитокинами, такими как ИЛ-6, осложняя использование данных маркеров как отражения запасов железа, что будет рассмотрено далее. Гепцидин подавляется эритроферроном, продуцируемым эритробластами в условиях усиленного эритропоэза, например после кровопотери, таким образом облегчая попадание железа из кишечника в циркулирующую кровь и цикл железа в макрофагах.
Дополнительный контроль в виде обратной связи есть в регуляции мРНК для многих белков, значимых для метаболизма железа. Стабильность мРНК рецептора трансферрина и трансляция мРНК ферритина, например, контролируются регуляторными белками железа, которые связывают данные мРНК в условиях низкого уровня железа.
В случае с ферритином трансляция его мРНК блокируется 5’-регуляторными белками железа; при достаточном количестве железа для связывания с регуляторными белками железа они высвобождаются и ферритин продуцируется для секвестрации избыточного железа. Напротив, в мРНК рецепторов трансферрина регуляторные белки железа связывается с 3’-концом для его стабилизации. Когда железо связывается с регуляторными белками железа, они высвобождаются, дестабилизируя сигнал с целью снижения уровней рецептора трансферрина и ограничения дальнейшего поступления железа в клетки.
Данная система позволяет получить очень быструю реакцию на потоки железа, дополнительно подчеркивая значимость тщательной регуляции железа для функционирования и здоровья клеток.
Относительно недавним открытием в данной области является повторный цикл железа из состояния секвестрации ферритина. Это достигается с помощью специальной формы аутофагии, ферритинофагии. Аутофагосомы нацелены на ферритин с помощью белка NCOA4, который стабилизируется в условиях низкого уровня железа в цитозоли. Таким образом, данный процесс приводит к распаду ферритина и высвобождению запасов железа при уменьшении уровней железа в тканях.
Все процессы, вовлеченные в миграцию железа: сопровождение, секвестрация ферритином, ферритинофагия и внедрение в простетические группы, — означают, что общие уровни внутриклеточного железа могут оказывать очень разное влияние на функцию клетки в зависимости от того, является ли железо свободным, безопасно ли оно секвестрируется в ферритине или внедряется в гем или кластеры «железо-сера».
Таким образом, для понимания функционального статуса внутриклеточного железа требуется информация о его потоке и компартментализации, которая может быть частично получена на основани уровней мРНК рецепторов трансферрина, NCOA4, ферритина, железа, связанного с гемом, и т.д.