Различия сахарного диабета при наследственном гемохроматозе и высоком поступлении железа в организм - по руководству США
Фенотип СД, обусловленного наследственным гемохроматозом, а именно первичный дефект, связанный с секрецией инсулина, по крайней мере на стадии предиабета с повышенной чувствительностью к инсулину, имеет явное отличие от фенотипа типичного СД 2-го типа, который характеризуется инсулинорезистентностью и последующим увеличением секреции инсулина. Как могут быть два данных несопоставимых фенотипа связаны с высоким содержанием железа в тканях?
Одним вариантам является разное распределение железа в тканях при двух состояниях. При состояниях с низким содержанием гепцидина, как и при наследственном гемохроматозе, в любой клетке с высокой экспрессией ферропортина будет пониженный уровень клеточного железа, поскольку ферропортин не снижается, а железо свободно выводится из данных клеток. Помимо энтероцитов кишечника, клетки с высокой экспрессией ферропортина включают макрофаги и, как было установлено нашей группой, адипоциты.
Оба типа клеток являются центральным звеном патогенеза СД: изоляции сигнала воспаления к адипоцитам или макрофагам достаточно для развития инсулинорезистентности. Таким образом, при наследственном гемохроматозе оба типа клеток имели бы сниженный уровень железа и, согласно этому источнику, по крайней мере пониженный окислительный стресс, тогда как при избытке питательных веществ будет противоположный эффект, при котором высокий уровень гепцидина удерживает избыток железа в клетках данного типа.
В дополнение к возможному глобальному увеличению окислительного стресса в клетках данного типа железо обладает более специфичными эффектами в адипоцитах, что может объяснить его связь с инсулинорезистентностью. Одним из данных эффектов является снижение секреции инсулин-сенсибилизирующего адипокина, адипонектина. У людей нормальные уровни ферритина сыворотки крови имеют обратную связь с адипонектином, независимо от воспаления, оцениваемого по уровню С-реактивного белка и других цитокинов.
У лиц с СД 2-го типа и у лиц с ожирением и СД выявляются повышенные уровни ферритина и пониженные уровни адипонектина по сравнению с лицами с ожирением без метаболического синдрома. Так, когда мыши получали рационы, богатые железом, культивируемые адипоциты, обработанные железом, показали сниженные уровни мРНК и белка адипонектина.
Железо отрицательным образом регулирует транскрипцию адипонектина посредством FOXO1-опосредственной регрессии. Таким образом, железо влияет на одну из центральных контрольных точек транскрипции метаболических процессов. Потеря канала экспорта железа адипоцитами, ферропортина, у мышей привела к нагрузке железом адипоцитов, снижению адипонектина и инсулинорезистентности.
Напротив, перегрузка организма железом и повышенная экспрессия ферропортина адипоцитами в связи с гемохроматозом связаны со снижением железа в адипоцитах, повышением уровня адипонектина, улучшением толерантности к глюкозе и повышенной чувствительностью к инсулину. Данные результаты демонстрируют причинно-следственную роль железа как фактора риска развития метаболического синдрома, а также роль адипоцитов в коррекции метаболизма посредством адипонектина в ответ на отложение железа.
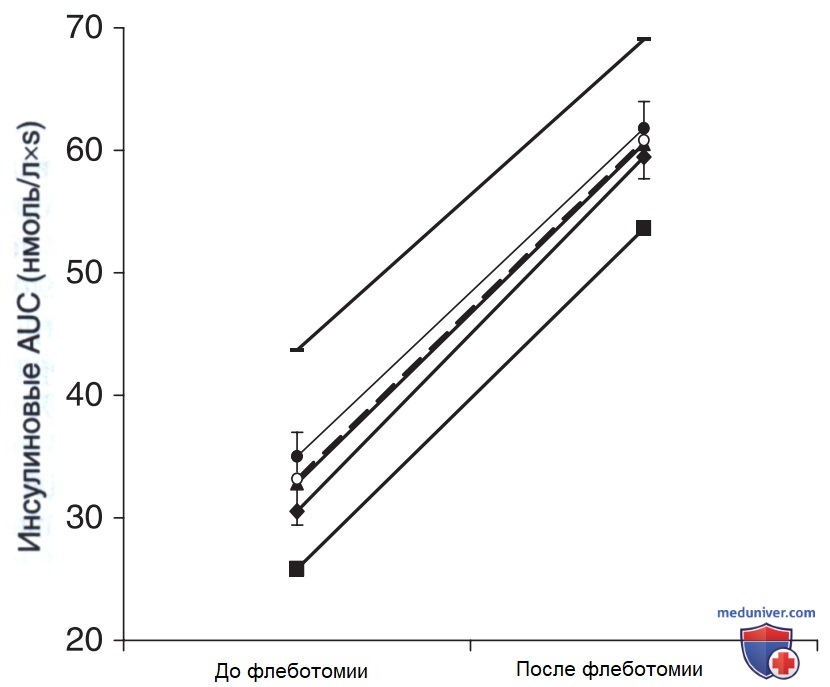
Улучшение секреции инсулина после флеботомии по поводу наследственного гемохроматоза: на рисунке показаны объединенные площади под кривыми концентрации инсулина (AUC) после орального глюкозотолерантного теста. Показатели для каждого испытуемого до и после флеботомии представлены в виде сплошных линий с заштрихованными обозначениям, а среднее значение для группы представлено в виде прерывистой линии с незаштрихованными кругами [± среднеквадратическая ошибка (SE)]. Р <0,0001 для увеличения значений инсулина
На основании вышеуказанных результатов было сделано предположение о потенциальной роли жировой ткани как датчика уровня железа, согласно которому адипоциты используют уровни железа для определения уровней секреции гормонов, регулирующих метаболизм в других тканях, таких как мышцы и печень. Данная роль соответствует экспрессии нескольких специальных белков в жировой ткани, обычно ограниченных метаболизмом железа, таких как ферропортин и гепцидин.
Следующим доказательством данной роли является регуляция секреции лептина с помощью железа, при этом лептин является еще одним адипокином, который регулирует центральный гомеостаз энергии и топлива.
В отличие от клеток с экспрессией высоких уровней ферропортина, клетки с низким содержанием ферропортина или без содержания ферропортина будут накапливать железо при высоком уровне железа в сыворотке, как при низком количестве гепцидина, например при наследственном гемохроматозе, так и при высоком количестве гепцидина, например при избыточном поступлении железа с пищей. В β-клетках экспрессии ферропортина не происходит, поэтому здесь при обоих состояниях ожидается дисфункция β-клеток, как в данном случае.
Почему β-клетки являются особенно чувствительными к железу, неясно. Проникновение железа в клетки обычно регулируется на уровне рецептора трансферрина, чья мРНК уменьшается при высоком уровне внутриклеточного железа. Однако при более высоких уровнях насыщения трансферрина, как при наследственном гемохроматозе, в крови появится свободное железо, которое может попадать в клетки через другие менее специфические бивалентные транспортеры металлов.
Разумно предположить, что клетки с высокими уровнями подобных транспортеров, такие как β-клетки, переносящие большое количество цинка для конденсации инсулина в секреторных гранулах, могут быть особенно чувствительными к высокому уровню насыщения трансферрином.
Это даже может объяснить явление относительно повышенного усиления потери β-клеток при наследственном гемохроматозе по сравнению с СД 2-го типа, вероятно, в связи с более высокими уровнями насыщения рецептора трансферрина при наследственном гемохроматозе по сравнению с избыточным поступлением железа с пищей.